

研究藤壶防污,常常绕不开一个问题:如果迟迟找不到合适的附着表面,幼虫会不会在反复游泳和探索中耗尽能量?
这听起来很合理。藤壶进入金星幼虫阶段后不再摄食,游泳、维持生命和变态,都要依靠此前积累的储备。但“没有继续摄食”与“游泳很快就会耗尽能量”之间,还缺少定量证据。
发表于《Journal of the Royal Society Interface》的一项研究,将高速摄影与非稳态流体模型结合,估算了纹藤壶(Amphibalanus amphitrite)金星幼虫的游泳机械功。结果提醒人们:划水时的功率、整个游泳周期的平均功率,以及幼虫真正的代谢消耗,是三个不同的问题。
研究速览
论文题目:Measurement and hydrodynamic modelling quantifies the mechanical cost of cyprid locomotion
作者:Elijah Forstadt、Coco DeFrancesco、Audrey B. Kellogg、Jesse Belden、Beatriz Orihuela、Daniel Rittschof、James C. Bird。
研究单位:波士顿大学、美国海军水下作战中心纽波特分部、杜克大学;通讯作者为 James C. Bird。
期刊信息:Journal of the Royal Society Interface,2026,23:20260344。
原文链接:10.1098/rsif.2026.0344
一、只看平均速度,会漏掉什么?
金星幼虫并非一直向前游。它们会在游泳、螺旋运动、表面行走、旋转、休息和下沉之间切换;即使只看游泳,速度也有明显波动。
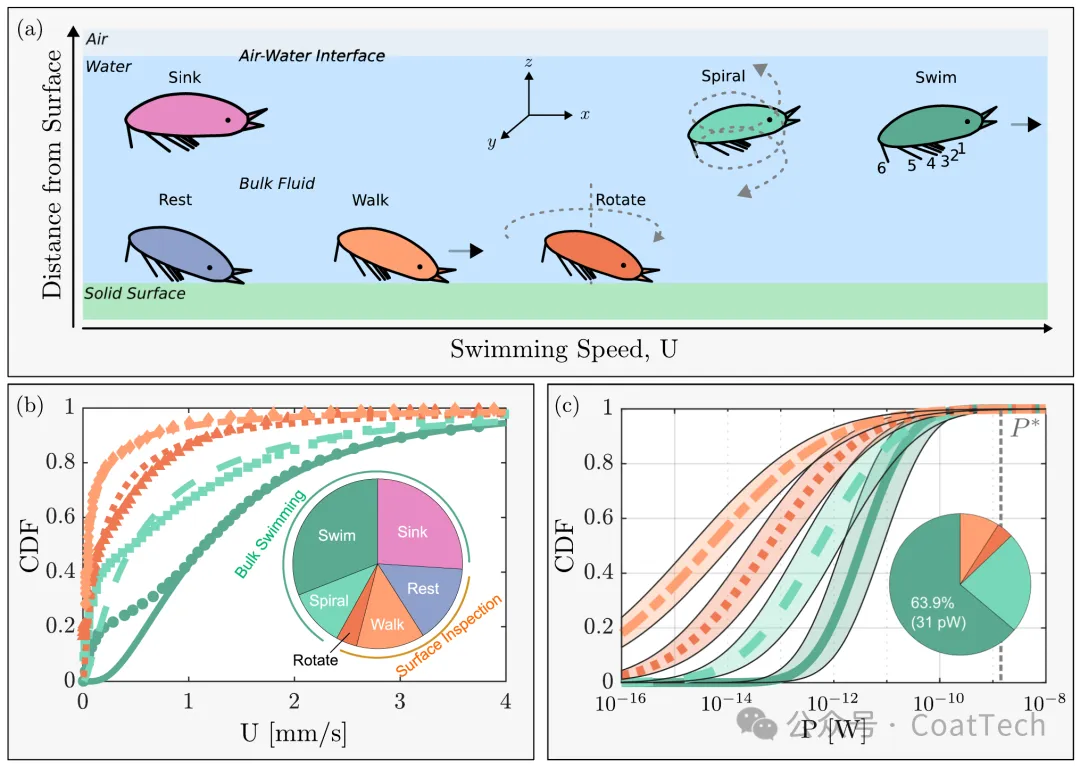
图1|不同运动模式对应不同的速度分布。图中的行为时间分配和速度数据整理自既有研究,并非全部来自本文新拍摄的幼虫;右侧功率分布则由模型换算得到。来源:Forstadt 等,2026,原文 Figure 1,CC BY 4.0。
作者先把幼虫简化为等效球体,修正有限雷诺数下的阻力,得到机械功率大致随速度的 2.1 次方 增长的关系。也就是说,偶尔出现的快速冲刺,对功率的贡献可能比它占用的时间更大。
这也是平均速度的局限:同样的平均位移,匀速前进和停停走走可能对应不同的机械需求。要算清这笔账,就得看一次划水到底怎样发生。
二、把一次划水拆成“推进—恢复—等待”
研究团队使用每秒 500–1000 帧的高速摄影,分析了 14 只幼虫、40 余次划水。每个周期被分为推进划水、附肢恢复和两次划水之间的等待。
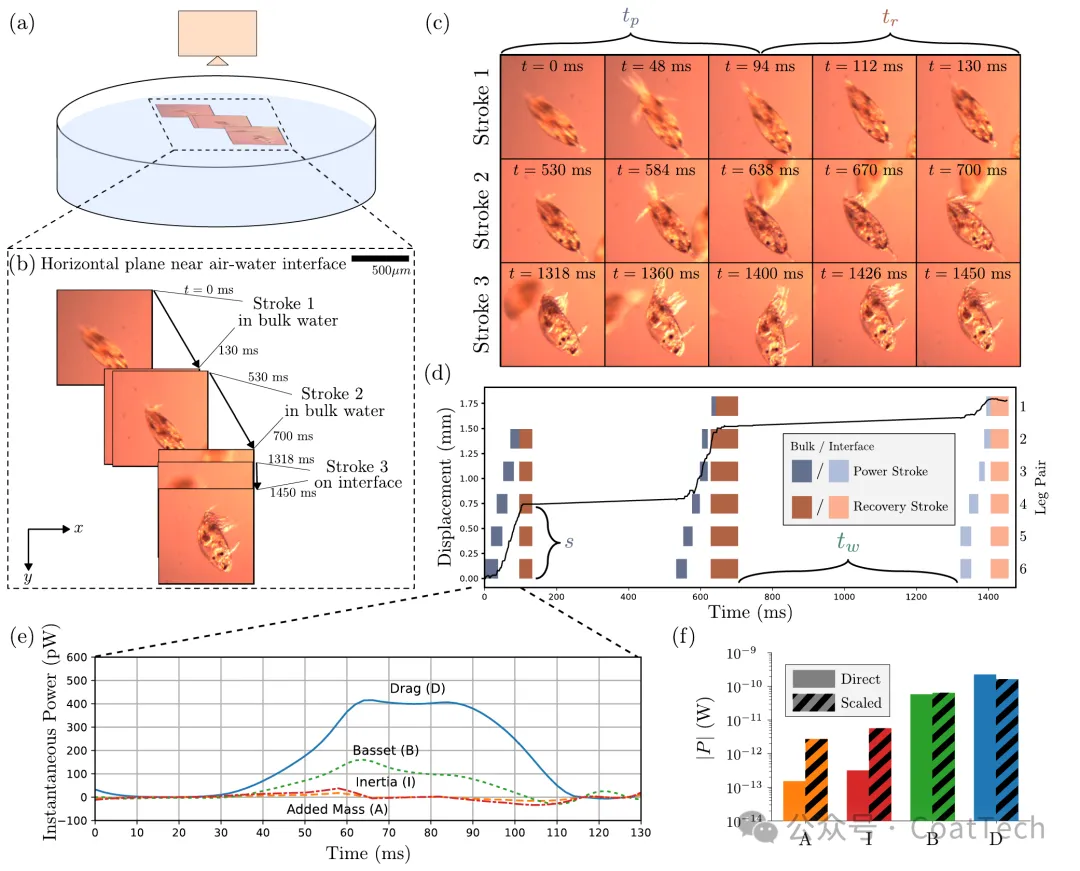
图2|前两次划水发生在水体中,第三次发生在气—水界面。位移曲线显示,前进主要集中在推进阶段。下方功率曲线由运动数据和模型计算得到,不是直接测力或测量耗氧的结果。来源:Forstadt 等,2026,原文 Figure 2,CC BY 4.0。
合并各温度数据后,推进阶段平均约 59.8 ms,恢复阶段约 37.4 ms,等待则达到 431 ms。等待时间远长于一次划水,是解释平均能耗的关键。
为了记录较长的停顿,作者利用了幼虫能停留在气—水界面的特点。界面上的记录主要用于测量时间,而功率模型解释的是水体中的游泳,两者不能直接等同。
模型采用修正后的 Basset–Boussinesq–Oseen 框架,把阻力、附加质量、幼虫惯性和 Basset 历史力纳入计算。后者可以理解为:周围水体不会立即忘记幼虫刚才的加速运动,先前形成的流动仍会影响当前受力。
结果显示,阻力是主要的机械功率来源,Basset 历史项次之。因此,把每一次快速加减速都当成匀速运动,会漏掉一部分非稳态效应。
三、水温升高,为什么反而更费力?
水温升高会降低水的黏度。若幼虫动作不变,阻力减小,游泳理应更省力。但实际观察中,较高温度对应更短的推进时间:近似相同的划水位移,在更短时间内完成,需要更高的速度和功率。
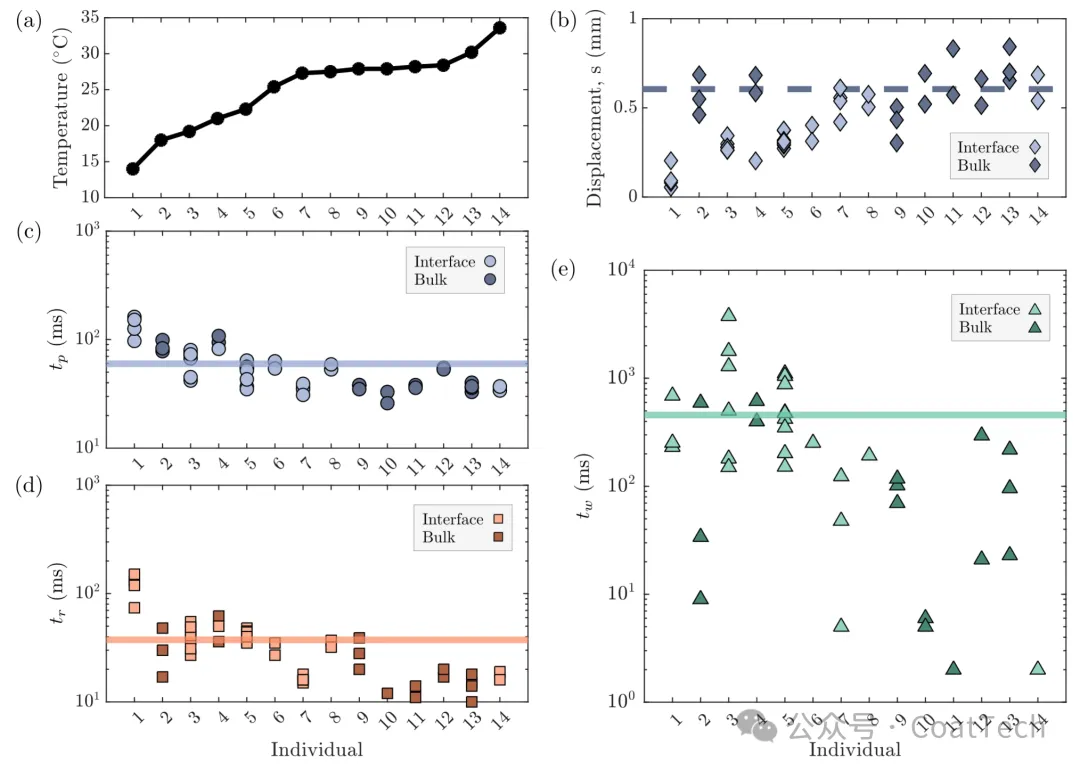
图3|14 只幼虫按测量温度由低到高排列,每只只在一个温度下测量,并记录多次划水。推进时间随温度升高而缩短,等待时间则高度分散。浅色点为界面运动,深色点为水体运动。来源:Forstadt 等,2026,原文 Figure 3,CC BY 4.0。
作者因此比较了两套模型:一套只改变水的黏度,另一套同时纳入随温度变化的划水时间。两者给出了相反趋势。
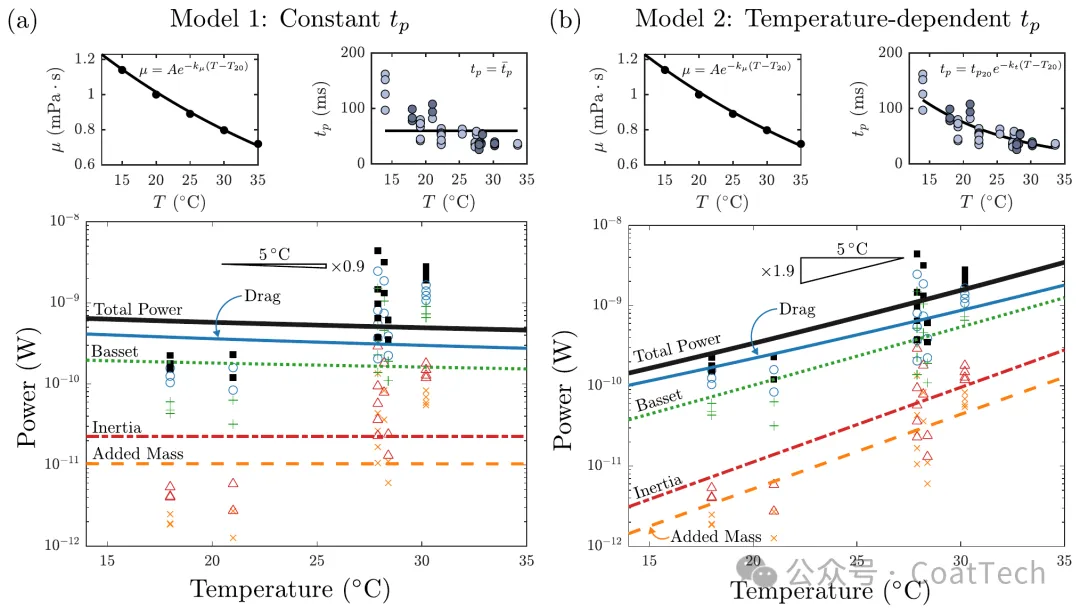
图4|仅改变黏度时,预测功率随升温略降;加入划水时间变化后,预测功率上升。曲线为模型预测,散点功率也由实测运动学数据换算,并非直接测得的能量消耗。来源:Forstadt 等,2026,原文 Figure 4,CC BY 4.0。
在耦合模型中,每升高约 5 ℃,推进划水阶段的机械功率约增加至 1.9 倍。这不是全天能量消耗的普遍温度规律,也不能表述为“水温升高 5 ℃,幼虫寿命减半”。
此外,这些温度差异来自不同个体之间的比较。附录的混合效应分析支持推进时间与温度的负相关,但仍不能把它当成同一只幼虫升温前后的因果验证。
四、划水时功率高,不代表整天都在高功率运动
把恢复和等待纳入周期,结果就明显降低。作者近似认为机械能主要消耗在推进阶段,因此:
周期平均功率 ≈ 推进阶段功率 × 推进时间 ÷ 完整周期时间。
数据来源:原文 Tables 3、4,均取推进时间随温度变化的模型;恢复和等待时间采用合并数据的均值。pW 为皮瓦,1 pW = 10⁻¹² W。
这组结果说明,快速划水和较低的长期平均机械需求可以同时存在。这里的温度影响也会被停顿调节,不能直接沿用划水阶段的“每 5 ℃ 接近翻倍”。
长停顿还与被动下沉有关。按文中采用的体长和下沉速度估算,约 0.5 秒就足以让幼虫下沉一个体长;等待时间拟合分布中,约 28.7% 的间隔超过这一时长。因而,下沉可能自然发生在间歇游泳过程中。
五、每天几个微焦耳,究竟算多还是少?
如果把观察到的游泳周期连续重复 24 小时,耦合模型给出的每日机械能约为:15 ℃ 时 2.7 μJ,30 ℃ 时 9.8 μJ。这是由短时运动统计外推的结果,并非连续一天的直接测量。
与文献报道的约 3–6 mJ 脂质能量储备相比,上述机械功约相当于储备的 0.05%–0.33%/天。从机械功这一层面看,日常游泳的直接成本较小。
但肌肉把化学能转成外部机械功,并不是百分之百有效。若转换效率较低,实现同样的游泳动作,就可能需要更多代谢投入。这篇论文没有测得该效率,也没有给出游泳占全部代谢能耗的确切比例。
因此,数据支持“直接机械成本不大”,还不足以推出“游泳几乎不耗能”或“幼虫可以无限期寻找附着点”。基础维持、表面探索、附着和变态仍要消耗储备。
六、对防污研究,真正的启发在哪里?
这项工作让“幼虫是否被反复游泳耗尽能量”成为可以检验的问题。若一块表面让幼虫迟迟不附着,仅凭游动频繁,就判断其被“累垮”,证据仍然不足。
对后续防污实验,更有价值的是同时记录行为时间分配、脂质或代谢变化,以及最终附着和变态结果,区分表面拒附、能量不足与其他生理影响。这是由本文引出的实验思路,论文自身没有测试任何防污涂层效果。
结果的适用范围也需要留意:样本主要来自同一批次,幼虫体形被简化为球体,模型没有逐一解析附肢推进;界面附近的记录与天然海水中的自由运动,也可能存在差异。作者关于界面运动可能更省能的讨论,仍属于有待专门模型验证的推测。
这篇研究最值得带走的认识是:理解幼虫的能量预算,既要看它怎样划水,也要看它多久才划一次;从机械功走向真实的生理代价,还需要代谢证据补上最后一环。
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。
官方微信
《腐蚀与防护网电子期刊》征订启事
- 投稿联系:编辑部
- 电话:010-62316606
- 邮箱:fsfhzy666@163.com
- 腐蚀与防护网官方QQ群:140808415
“海洋金属”——钛合金在舰船的
腐蚀与“海上丝绸之路”