

mLife | 分子演化学揭示生物异化亚硫酸盐还原起源于古太古代中高温环境
摘要
自古太古代以来,异化亚硫酸盐还原 (DSR) 对于生物地球化学硫循环中的微生物能量代谢至关重要。然而,由于缺乏对地质记录与基因组数据的综合评估,DSR 的演化起源在时间、栖息地和遗传基础方面仍不明朗。本研究通过挖掘中温至高温环境的宏基因组,重建了 Dsr 蛋白的演化途径及祖先序列。对关键催化酶 DsrAB 及其他 Dsr 蛋白的系统发育分析表明,最早且最基本的功能级联 DsrABCNM,在细菌和古菌编码的若干基底分支 DsrAB 簇的最新共同祖先之前便已出现。通过一种以物种树校准蛋白质树的分子定年策略,我们预测 DSR 起源于 35.08 亿年前 (Ga)。这一发现有力地证实了 DSR 最早的地质证据 (约 3.47 Ga)。此外,祖先序列重建的预测结果表明,DSR 起源时 DsrA 的最适催化温度约为 73°C,这与早期太古代热液沉积物的岩石学和地球化学证据相吻合。在热起源之后,DsrA 在大氧化事件之后分化出适应不同温度水平的亚支系,还原型古菌型 DsrA 的演化即为例证。我们的研究结果将分子年龄与地质记录同步,深化了我们对最早 DSR 系统的认识,并揭示了太古代生物圈中微生物生命的酶学适应机制。
关键词: 古菌演化;dsrAB;宏基因组学;亚硫酸盐还原;硫循环
影响声明
亚硫酸盐还原是早期地球上一个重要的生物地球化学过程,但其演化起源尚不明确。通过开发一种新的分子定年策略,我们估计普遍存在的异化亚硫酸盐还原酶 DsrAB 起源于 35.08 亿年以前 (Ga)。这一发现为异化亚硫酸盐还原最古老的地质记录 (约 3.47 Ga) 提供了有力支撑——该记录早在二十多年前便已被发现。此外,祖先蛋白重建表明,最早的亚硫酸盐还原微生物很可能是嗜热菌或中度嗜热菌,这一结论与太古代热液沉积物的地质证据相吻合。
图表说明
图 1. DsrAB 蛋白的系统发育分析及 Dsr 蛋白组装体的起源。
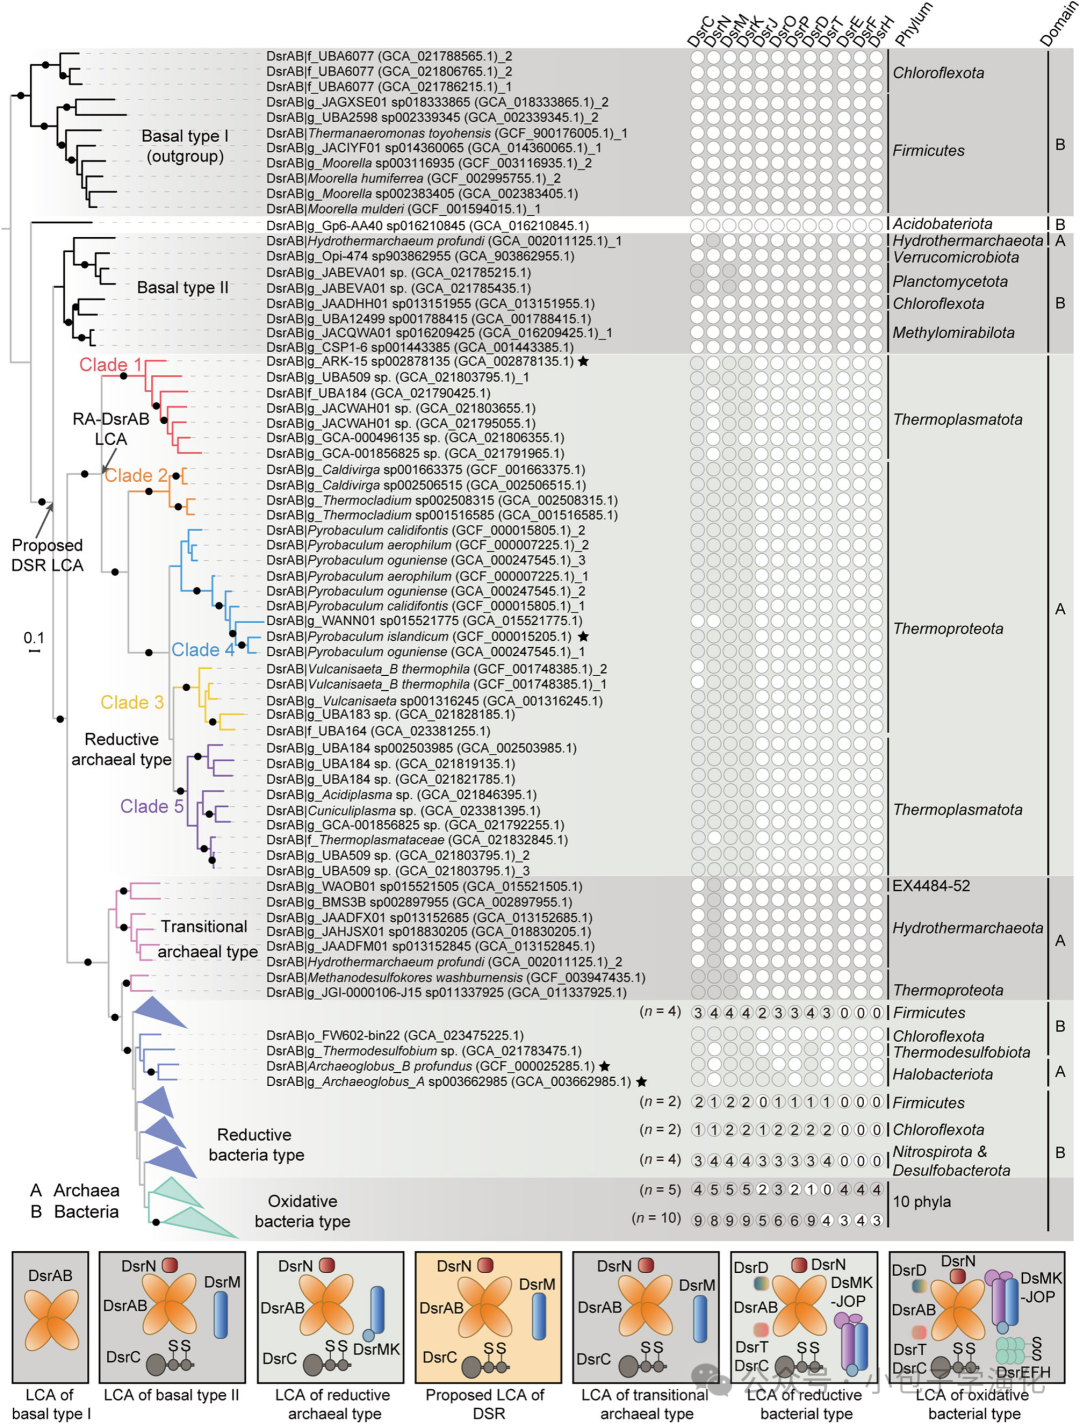
DsrAB 的最大似然系统发育树(模型自动选为 LG + I + R9,415 条序列,970 个比对位置),根据旁系同源物定根结果,以三条绿弯菌门和八条厚壁菌门 DsrAB 序列(基底 I 型 DsrAB)的支系作为外群进行定根。超快 bootstrap 支持值 ≥95% 的分支以黑色点标示。不同类型 DsrAB 及 RA-DsrAB 的五个单系亚组分支以不同颜色标示。编码 DsrAB 的基因组中 Dsr 蛋白的存在情况,以及这些 Dsr 蛋白在其特定系统发育树中位于与 DsrAB 树中 DsrAB 类型相对应的同一类型簇中的情况,以实心圆圈表示(图 S2-S11)。细菌类型折叠分支的实心圆圈表示 ≥50% 的情况存在实心圆圈。分类单元分类来源于 GTDB 分类学排序:A = 古菌,B = 细菌,"10 phyla" = 绿弯菌门、变形菌门、螺旋体门、放线菌门、脱硫杆菌门、硝化螺旋菌门、SZUA-79、SAR324、黏球菌门和酸杆菌门。"f_"和"g_"分别代表科和属的候选分类单元名称前缀。星号表示这些 DsrAB 蛋白的 DSR 功能已通过实验验证。图底部显示了每种 DsrAB 类型 LCA 所提议的 Dsr 蛋白组合。
图 2. 编码 RA-DsrAB 的热原体门的演化时间尺度和栖息地特征。
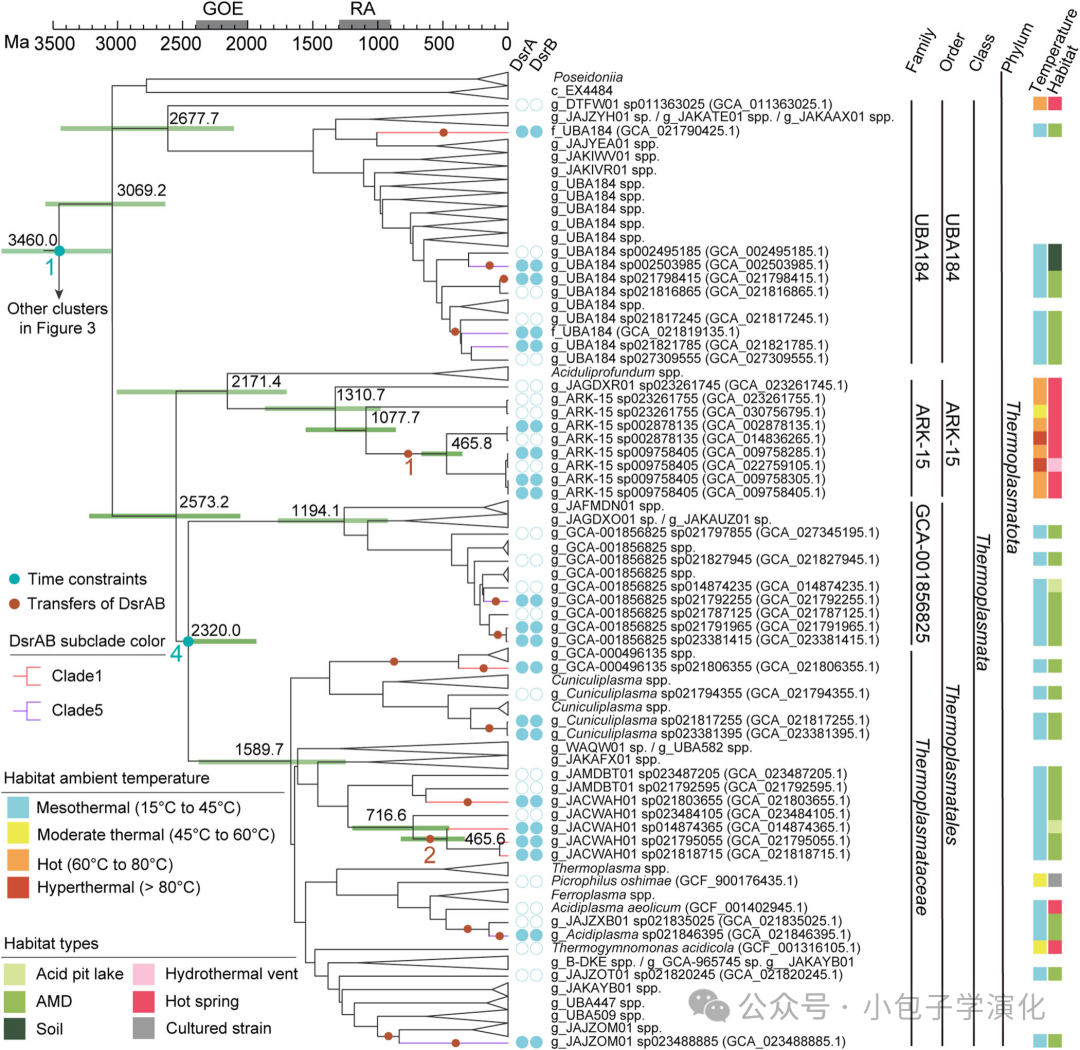
利用 47 个标记基因重建了古菌的最大似然系统发育树(模型设置为 LG + PMSF + F + G,12,166 个比对位置)。以四个细菌基因组作为外群确定树根。此处仅显示热原体门支系,热变形菌门支系见图 3。使用 RelTime-ML 和 LG + G 模型进行分子定年,设定四个节点约束(表 S4)中相应节点上的数字和蓝色点所示。地质时间尺度显示在树的上方。罗迪尼亚大陆汇聚 (RA) 和大氧化事件 (GOE) 的时期在地质时间尺度中标示。所选节点上的分子定年 95% 置信区间 (CI) 以绿色条显示。古菌基因组中 DsrA 和 DsrB 的存在(实心圆圈)和缺失(空心圆圈)情况如图所示。特定古菌支系中的 DsrA 和/或 DsrB 通过对相应分支着色显示。RA-DsrAB 亚支系的颜色与图 1 一致。通过调和物种树和 DsrAB 树获得的 DsrAB 转移事件以棕色点标示在相应分支上。棕色数字代表图 4 树校准中用作约束的分支时间尺度。每个基因组名称包含分类和 NCBI 登录号。"c_"、"o_"、"f_"和"g_"分别代表纲、目、科、属候选分类单元名称前缀。基因组来源栖息地及其温度以彩色框显示。
图 3. 编码 RA-DsrAB 的热变形菌门的演化时间尺度和栖息地特征。
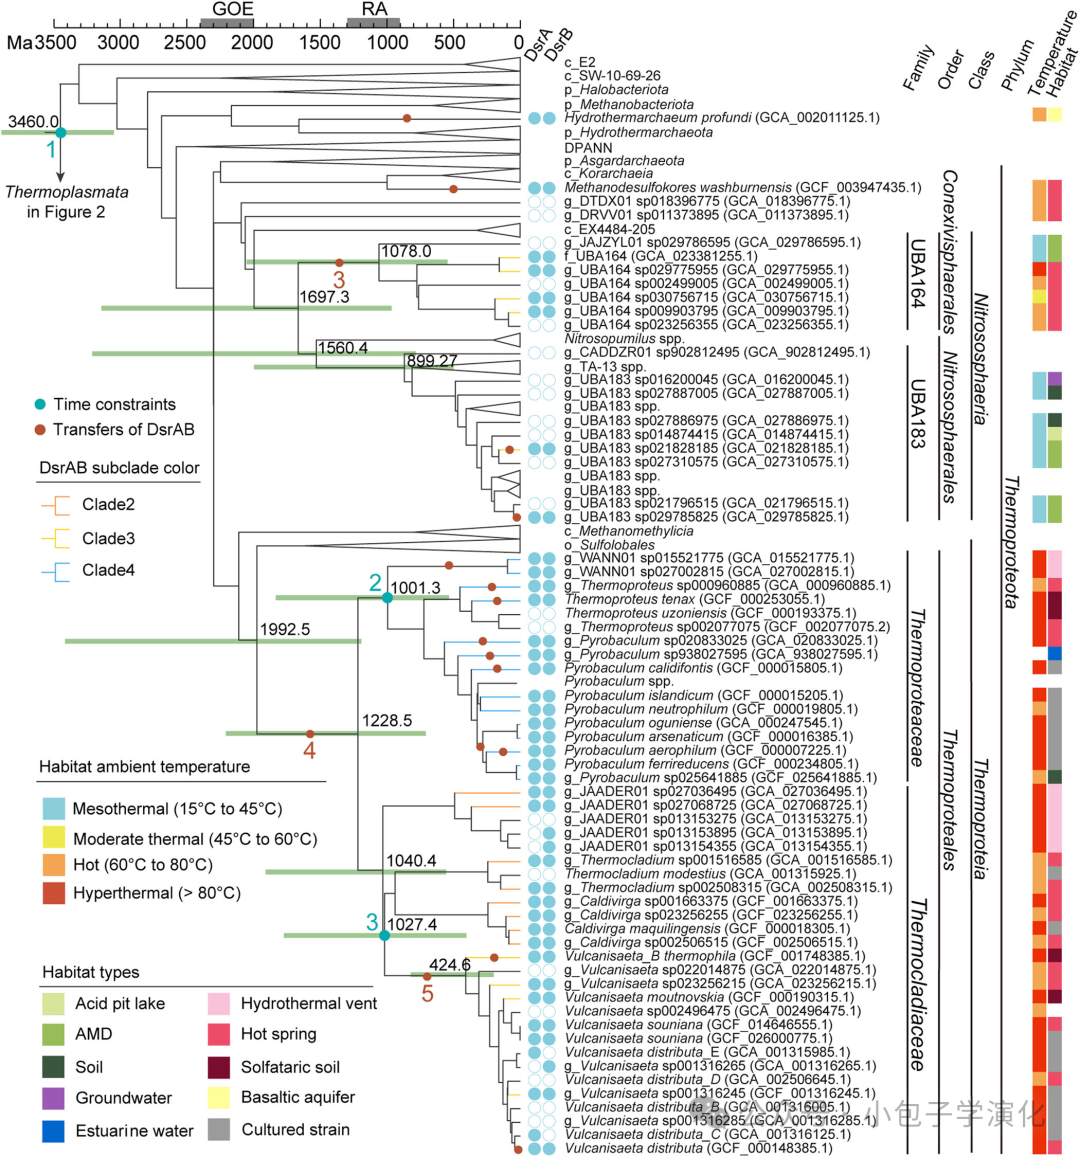
此处仅显示图 2 中描述的热变形菌门支系。
图 4. 基底型 DsrA 和 RA-DsrA 的分子定年。
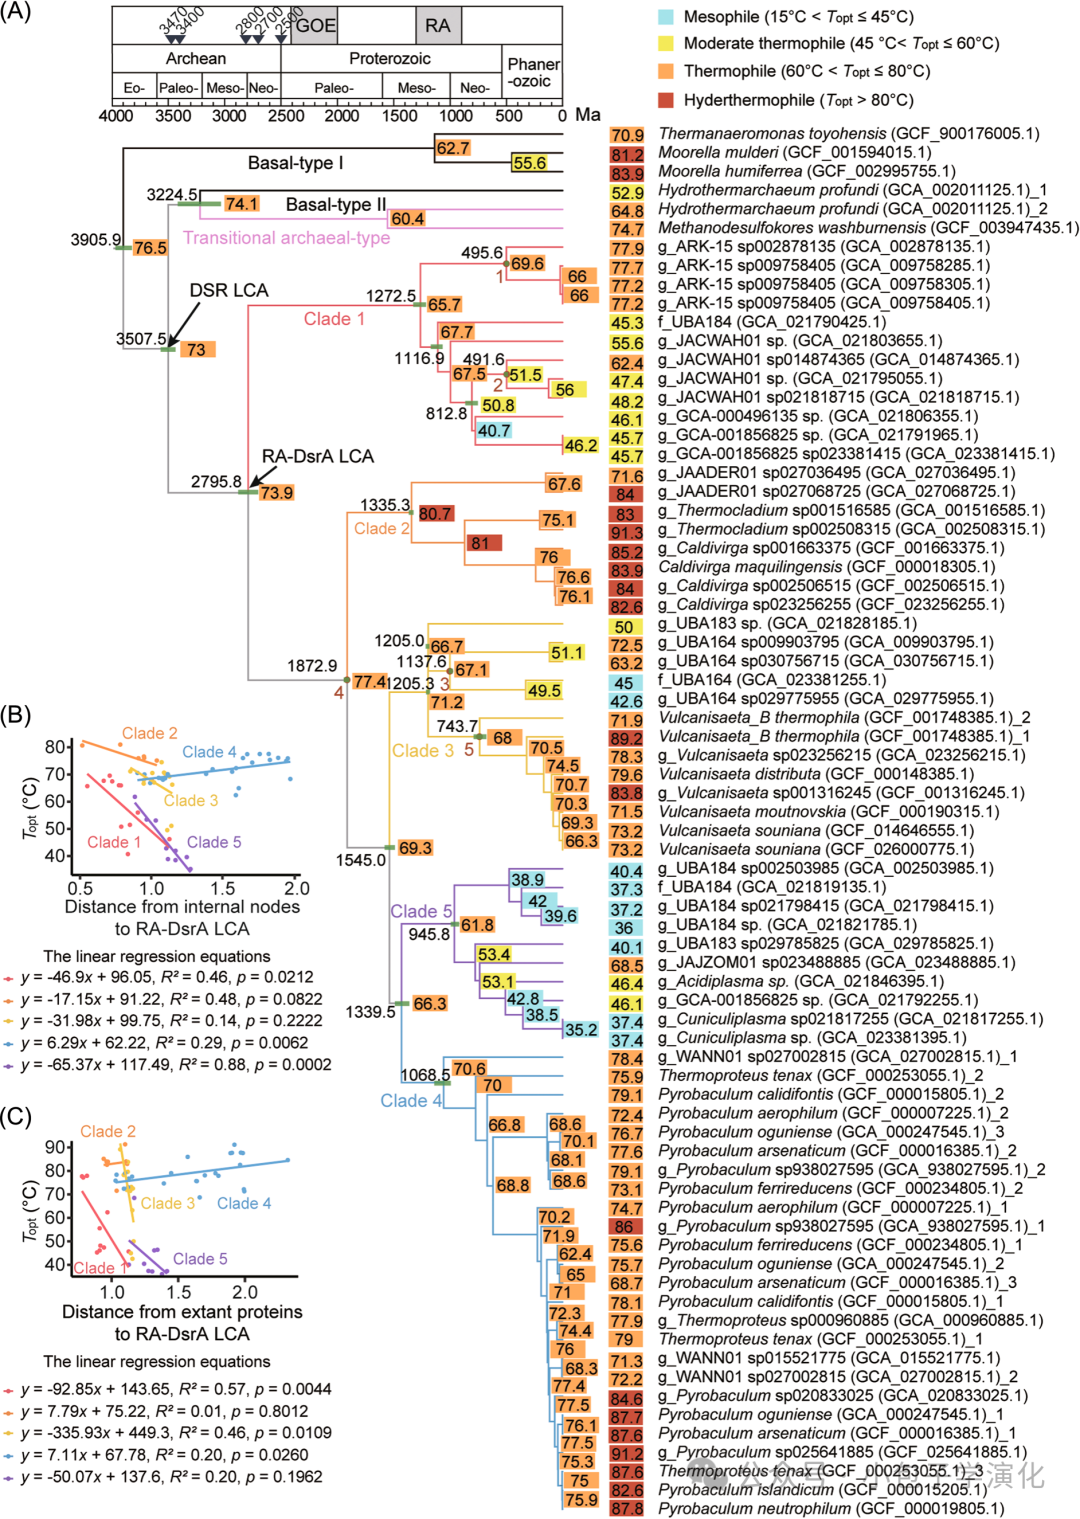
(A) 利用来自 74 条 DsrAB 序列(289 个氨基酸位点)的代表性 DsrA 和 DsrB 同源物重建的最大似然系统发育树(模型自动选为 LG + I + G4)。以 DsrB 支系作为外群定根(此处未显示),仅显示 DsrA 部分。棕色节点约束转自图 2 和图 3(表 S4)。所选节点的定年值以 95% CI 显示,CI 以绿色条标示。基底型 DsrA、过渡型古菌型 DsrA 和 RA-DsrA 亚支系的颜色与图 1 一致。RA 和 GOE 的时期在地质时间线中标示。地质时期标记为始太古代、古太古代、中太古代、新太古代、古元古代、中元古代和新元古代。三角形代表太古代微生物硫酸盐还原的地质证据(表 S10)。祖先和现存蛋白序列的 Topt 值分别显示在内部节点和外部节点处。颜色阴影表示四个温度范围。(B, C) 节点间祖先 (B) 或现存 (C) DsrA 蛋白的演化距离与 Topt 之间的相关性。线性回归方程如图所示。
引言
硫在早期生命演化中发挥了至关重要的作用。H₂S 和 SO₂ 通过火山活动释放到地球表面,为早期地球上微生物代谢中含硫化合物提供了主要来源。模型研究还表明,在大氧化事件 (GOE) 之前的贫氧水体中,亚硫酸盐的浓度可能等于甚至高于硫酸盐。在这种缺氧环境中,微生物可以还原这些广泛存在的化合物(如硫代硫酸盐和亚硫酸盐)进行无氧呼吸,从而参与地球上最早的生物地球化学硫循环。然而,微生物中异化亚硫酸盐还原 (DSR) 的起源,包括其地质时间、环境条件和所涉及的催化蛋白,至今尚未被完全理解。
硫同位素数据表明,亚硫酸盐还原应该出现在 3.5 Ga 之前。澳大利亚"德雷瑟组 (Dresser Formation)"重晶石沉积物中硫化物的发现是 DSR 最早的证据;然而,这一生物活动所处的环境温度仍存在争议。通过四重同位素系统学和界面角方法,研究者得出结论,这些硫酸盐/亚硫酸盐还原微生物很可能是嗜中温菌(即在中温环境中生长的生物——环境温度从 15°C 到 45°C)或中度嗜热菌(即在中等热环境中生长的生物——环境温度从 45°C 到 60°C)。然而,最近一项对叠层石、微生物栅栏状组构和气泡的研究揭示,德雷瑟组地层最初源自陆地热泉区域。因此,最早的 DSR 究竟仅发生在泉眼周边的中温 (15°C 至 45°C) 到中度热温 (45°C 至 60°C) 外围环境,还是也发生在热泉喷口的高温 (60°C 至 80°C) 乃至超高温 (>80°C) 区域,目前仍不清楚。
另一方面,基因组和系统发育分析也未能就 DSR 最早阶段的环境温度得出结论。目前已知参与 DSR 的酶包括异化亚硫酸盐还原酶 (Dsr)、厌氧亚硫酸盐还原酶和细胞色素 c 亚硫酸盐还原酶。后两者仅零散地由细菌编码,而 Dsr 酶则广泛分布于细菌和古菌中。它们被认为是早期地球上微生物能量代谢中最古老、最关键的酶之一。以往的系统发育分析通常将 Dsr 级联中两种关键蛋白的同源物——Dsr A 亚基和 B 亚基 (DsrAB)——划分为四个主要亚支系:基底型 DsrAB(功能未知)、还原型古菌型 DsrAB(RA-DsrAB,催化亚硫酸盐还原为硫,仅见于古菌)、还原型细菌型 DsrAB(催化亚硫酸盐还原为硫,仅见于细菌,极少数例外)以及氧化型细菌型 DsrAB(催化硫氧化为亚硫酸盐,仅见于细菌)。由于目前缺乏基底型 DsrAB 同源物具有亚硫酸盐还原酶功能的实验验证,RA-DsrAB 被认定为功能性 Dsr 的最早形式。RA-DsrAB 此前主要在热液环境中的热原体门 (Thermoplasmatota,旧称广古菌门 Euryarchaeota) 和热变形菌门 (Thermoproteota) 古菌中发现,但近期的宏基因组方法在中温环境(包括酸性矿山废水 AMD)的古菌支系(如亚硝化球菌纲 Nitrososphaeria,旧称泉古菌门 Thaumarchaeota)和热原体门中检测到了携带 dsrAB 基因的类群。这使得 DSR 起源时的环境温度仍是一个悬而未决的问题。
此外,Dsr 级联早期演化历史中蛋白质的调控轨迹仍不清晰。DsrAB 是一种异四聚体复合物,由亚硫酸盐和 DsrC 生成 DsrC-三硫化物。DsrC-三硫化物是一种中间产物,充当 DsrAB 复合物电子的最终受体。DsrN 对于辅助 DsrAB 中的铁血红素辅因子是必需的,且高度保守。DsrM 和 DsrK 形成供电子的膜复合物 DsrMK,催化 DsrC-三硫化物的还原并释放硫化物和 DsrC。蛋白质组合 DsrABCNMK 被认为是 Dsr 级联的最小功能集合。在最近一项基因组和系统发育研究中,这一最小集合首先在亚硫酸盐还原型古菌中组装,然后转移至亚硫酸盐还原型和硫氧化型细菌。随后,随着其他 Dsr 蛋白的获取,包括与 DsrMK 结合的 DsrJOP 复合物,一个膜复合物逐渐形成。DsrD 调控 DsrAB 复合物,DsrT 调控 DsrMKJOP 的表达,DsrEFH 复合物在硫氧化微生物中充当 DsrC 的硫供体。然而,在古菌型 DsrAB 之前的功能性 Dsr 级联的原始形式仍属未知。
为探究 DSR 的起源与早期演化,我们对 DsrAB 同源物进行了大规模演化分析,重点关注靠近 DsrAB 系统发育树根部的基底型和古菌型 DsrAB。我们分析了 DsrAB 及 Dsr 级联中其他蛋白的演化路径,并进行分子定年以估算 DsrA 树中 DSR 起源的时间。此外,我们重建了 DsrA 的祖先序列,以预测整个演化树中该酶的最适催化温度 (Topt)。最后,我们将分子演化分析结果与地质记录进行比对,以验证 DSR 起源在时间和环境上的一致性。
结果
DsrAB 的演化多样性
在 376 个基因组中共鉴定出 415 条唯一的 DsrA-DsrB 串联序列(以下简称 DsrAB),其中 314 条来自基因组分类数据库 (GTDB) v207_236,62 条来自 92 个 AMD 宏基因组(表 S1)。利用旁系同源物定根进行系统发育推断,结果显示 DsrAB 同源物形成四个主要簇,分别命名为基底 I 型 DsrAB、基底 II 型 DsrAB、RA-DsrAB、过渡型古菌型 DsrAB、还原型细菌型 DsrAB 和氧化型细菌型 DsrAB(图 1)。基底 I 型包含来自绿弯菌门 (Chloroflexota) 和厚壁菌门 (Firmicutes) 细菌的 DsrAB 同源物。基底 II 型 DsrAB 包含来自疣微菌门 (Verrucomicrobiota)、浮霉菌门 (Planctomycetoa)、绿弯菌门和甲基镜菌门 (Methylomirabilota) 细菌以及一种深热古菌门 (Hydrothermoarchaeota profundi) 古菌的同源物。在这两种 DsrAB 类型之间发现了一条来自酸杆菌门 (Acidobateriota) g_Gp6-AA40 sp016210845 的基底分支 DsrAB。
所有 RA-DsrAB 同源物均来自热原体门或热变形菌门古菌,而过渡型古菌型的拷贝则来自 EX4484-52 古菌门、深热古菌门和热变形菌门。所有还原型细菌型和氧化型细菌型 DsrAB 同源物均来自细菌,但还原型细菌型中有少数同源物来自古球菌科 (Archaeoglobaceae)。
尽管 DsrAB 树的拓扑结构与以往研究一致,但更新的 GTDB 数据库和 AMD 数据提供了更多细节,尤其是在基底型和古菌型 DsrAB 方面。例如,新增了三条与厚壁菌门互为姐妹的绿弯菌门同源物,以及两条属于浮霉菌门的细菌 DsrAB 作为基底 II 型 DsrAB。此外,RA-DsrAB 作为基底 II 型 DsrAB 的姐妹支系而发散。根据树的拓扑结构和成对序列比对结果,以 60% 的蛋白质相似度作为支系间的阈值,我们将 RA-DsrAB 序列分为五个单系支系(图 1 和图 S1)。支系 1 和 5 的序列均由热原体门编码,而支系 2、3 和 4 的所有序列均来自热变形菌门。支系 3 仅限于热纤菌科 (Thermocladiaceae),支系 4 仅限于热变形菌科 (Thermoproteaceae),表明 RA-DsrAB 存在分类群特异性的多样化(表 S1)。此外,这些支系的环境丰度与各种理化参数之间存在统计学支持的相关性(补充信息)。
Dsr 级联组装的演化及 DSR 的功能起源
为阐明 Dsr 级联组装与 DsrAB 演化的协同演化轨迹,我们重建了 Dsr 蛋白的系统发育树(图 S2-S11 及表 S2-S3),并将其拓扑结构与 DsrAB 进行比较。若某一 Dsr 蛋白树的拓扑结构与图 1 所示的 DsrAB 树模式一致(即基底型 DsrAB 分支最深,其次依次为 RA-DsrAB、过渡型古菌型 DsrAB、还原型细菌型 DsrAB 和氧化型细菌型 DsrAB),则认为该蛋白自 DsrAB 早期分化以来便与 DsrAB 存在演化关联。否则,该蛋白可能是在 DsrAB 较晚分化期间(即在还原型细菌型和氧化型细菌型 DsrAB 阶段)被招募进入 Dsr 级联的。
在 DsrC、DsrN 和 DsrM 的树中,来自基底 II 型 DsrAB、RA-DsrAB 和过渡型古菌型 DsrAB 相同基因组中的同源物聚集在单系的基底分支支系中,基底 II 型 DsrAB 与 RA-DsrAB 之间有明确的分离(图 S2-S4)。这一结果表明,在基底 II 型 DsrAB 的最新共同祖先 (LCA) 中,可能已存在 DsrABCNM 的最小集合(图 1)。在 DsrK 树中,RA-DsrAB 的同源物位于一个深层基底支系,表明 DsrK 可能是在 RA-DsrAB 的 LCA 中被招募进入 Dsr 级联的(图 1 和图 S5)。此后,DsrD、DsrJ、DsrO、DsrP 和 DsrT 可能在 RA-DsrAB 的 LCA 中加入,而 DsrEFH 则在氧化型细菌型 DsrAB 的 LCA 中被并入级联(图 1 和图 S6-S11)。
基于基底型和古菌型 DsrAB LCA 中级联的可能模式,我们推断在基底 II 型 DsrAB 与 RA-DsrAB 同源物的 LCA 中存在一种 Dsr 级联模式,其最小集合为 DsrABCNM(图 1)。尽管 DsrK 在这一祖先集合中的存在尚未明确,但功能性 DSR 途径所有其他关键成分的全面纳入值得关注。此外,这一配置与基底 I 型 DsrAB 支系 LCA 的配置明显不同。鉴于目前缺乏基底 I 型 DsrAB 拷贝具有亚硫酸盐还原活性的实验证据,微生物 DSR 很可能是在基底 I 型 DsrAB 分化之后、基底 II 型 DsrAB 与 RA-DsrAB 的 LCA 之前出现的(图 1 中标示的节点)。我们将这个 LCA 节点称为 DSR 的 LCA。
关于 DSR LCA 在 DsrAB 树中的位置,最深分支支系主要由目前由细菌编码的同源物构成(图 1)。然而,我们无法确认编码这种 DsrAB 的微生物宿主究竟是细菌还是古菌。
RA-DsrAB 编码基因在古菌中的转移
对古菌树中 RA-DsrAB 蛋白演化历史的重建表明,这些蛋白的编码基因在两个古菌门——热原体门和热变形菌门——的支系内部及其之间频繁发生转移(图 2 和图 3)。具体而言,支系 1 和支系 5 的 RA-DsrAB 蛋白在热原体门的 UBA184、ARK-15、GCA-001856825 和热原体科 (Thermoplasmataceae) 家族级支系内部发生了转移(图 2)。支系 3 的同源物被转移至热变形菌门的热纤菌科、UBA164 和 UBA183 家族级支系(图 3)。支系 2 的同源物被转移至热变形菌门的热纤菌科,支系 4 的同源物被转移至热变形菌门的热变形菌科(图 3)。
基底型和还原型古菌型 DsrA 演化起源与多样化的定年
首先,对由代表性古菌家族和其他编码 DsrAB 的古菌类群构成的物种树进行了分子定年,并设定了四个节点作为校准时间约束(图 2 和图 3)。古菌的根被定年为 3.460 Ga。RA-DsrAB 向这些类群的可检测转移最早发生在 1.993 Ga,最晚发生在近期。
将古菌物种树的分子定年结果用于校准 DsrA 树。具体而言,根据 ALE 结果,从含有主要 DsrAB 转移事件的古菌物种树中选取了五条分支(图 2 和图 3),并将其投影至 DsrA 树中的五个节点(图 4A)。古菌物种树中这些分支的时间范围被设定为 DsrA 树中相应节点的时间范围。这五个约束节点和一个上限年龄为 4.38 Ga 的树根一起,被用作校准 DsrA 树时间尺度的约束条件(表 S4)。五个约束节点包括:(1) g_ARK-15 古菌编码的同源物的 LCA(1.078 Ga–465.8 Ma);(2) 三种 g_JACWAH01 古菌编码的同源物的 LCA(716.6–465.6 Ma);(3) 四种 f_UBA184 古菌编码的同源物的 LCA(1.697–1.078 Ga);(4) 热变形菌目 (Thermoproteales) 同源物的 LCA(1.993–1.229 Ga);(5) 火山原菌属 (Vulcanisaeta) 同源物的 LCA(1.027 Ga–424.6 Ma)(图 2、图 3 和图 4A)。
分子定年结果显示,DsrA 的根可追溯至始太古代的 3.906 Ga(图 4A)。基底 II 型 DsrA 与 RA-DsrA 的 LCA(被认为是 DSR 的 LCA)被定年为早古太古代的 3.507 Ga,时间点恰在两个最古老的 DSR 地质记录 (3.470 和 3.400 Ga) 之前(图 4A)。此外,现存 RA-DsrA 的 LCA 被定年为中太古代-新太古代边界的 2.796 Ga,早于 GOE (2.5-2.4 至 2.1-2.0 Ga)。RA-DsrA 亚支系的多样化在此之后发生,每个支系开始分化的时间从支系 2 的 1.335 Ga 到支系 5 的 945.8 Ma 不等。这一时期横跨中元古代中期至新元古代早期,与罗迪尼亚大陆汇聚 (RA,1.3 Ga 至 900 Ma) 的时间一致(图 4A)。
DSR 起源时的环境温度
微生物蛋白质的氨基酸组成和二级结构通常通过演化来适应其栖息地温度。为追踪 DsrA 整个演化历史中的热适应性,我们预测了现存和祖先 DsrA 序列的潜在 Topt 值(综合考虑蛋白质序列和结构的数值)(图 4A 和表 S5)。
DsrA 树根部的 Topt 值为 76.5°C(图 4A)。DSR LCA 蛋白的 Topt 为 73°C,而基底 II 型 DsrA 和过渡型古菌型 DsrA 的 LCA 蛋白的 Topt 为 74.1°C。RA-DsrA 的 LCA 的 Topt 值为 73.9°C。这些结果表明,早期版本的 DsrA,包括功能性 Dsr 级联在 DSR 起源时的版本,很可能适应了高温环境。
RA-DsrAB 编码古菌的环境适应历史
尽管现存 RA-DsrA 的 LCA 很可能适应了高温环境 (73.9°C),但 RA-DsrA 各支系的拷贝随后在各种不同环境温度的条件下,在热变形菌门和热原体门支系之间频繁转移(图 4A)。通过计算祖先蛋白序列的 Topt,我们发现 RA-DsrA 的演化多样化在其起源之后总体上呈现从高温到中温环境适应的趋势。然而,这一总体趋势在不同 RA-DsrA 亚支系之间有所不同。支系 1、2 和 5 中祖先蛋白的 Topt 值与其节点到 RA-DsrA LCA 的演化距离呈负相关(R² > 0.46,p < 0.1,图 4B),但在支系 3 中相关性较弱(R² = 0.14,p = 0.2222),表明这些 DsrA 蛋白在演化过程中从高温和热环境适应到了中温和中热环境。相比之下,在支系 4 的 DsrA 祖先蛋白中,Topt 值与演化距离呈正相关(R² = 0.29,p = 0.0062),表明这些蛋白在后期演化中适应了比其嗜热祖先更高的温度环境(即适应环境温度为 60°C 至 80°C 的环境)。
现存 RA-DsrA 基因由来自不同温度和 pH 水平栖息地的古菌编码(图 2 和图 3)。在现存 RA-DsrA 蛋白中,Topt 值与 LCA 的演化距离之间观察到类似的相关趋势,但在支系 2 中观察到微弱的正相关(图 4C)。
讨论
DSR 起源的时间、环境和分子基础一直是悬而未决的科学问题。同位素证据表明,DSR 活动可追溯至太古代,最古老的记录为 3.47 Ga。由 Dsr 蛋白催化的 DSR 途径被认为是微生物中最古老、最普遍的代谢途径之一。由于 dsr 基因在细菌和古菌支系之间广泛横向转移,追溯功能性 Dsr 蛋白组装体及其微生物宿主的起源颇具挑战性。尽管许多研究已对 Dsr 蛋白(包括关键催化酶 DsrAB)进行了系统发育分析,但仅有一项近期研究探讨了演化早期阶段 Dsr 蛋白的组装。根据该研究,古菌可能是最先发展出亚硫酸盐还原所需完整 DsrABCMK(N) 复合物的。通过从更新的公共数据库(特别是在中温环境中采样的宏基因组)中招募编码 Dsr 蛋白的基因组,我们恢复了基底型和还原型古菌型 DsrAB 及其共组装 Dsr 蛋白的更多细节。利用这些更新的信息,我们发现 DSR 的功能性 Dsr 组装(包括基本成分 DsrABCNM)很可能发生在基底 II 型 DsrAB、RA-DsrAB 和过渡型古菌型 DsrAB 的 LCA 之前,年龄为 3.51 Ga(图 1 和图 4A)。这一时间与已知最古老的 DSR 地质记录 (3.47 Ga) 高度吻合。因此,我们的结果为 DSR 的酶学基础提供了迄今最一致的证据,并表明最初的 DSR 由包含 DsrABCNM 的最小酶级联在古太古代催化。DsrK 起源的时间由于数据有限而仍不确定。它可能在 DSR 开始时 (3.51 Ga) 便已存在,或者也可能在 RA-DsrAB 支系的共同祖先中出现,并随后转移至含有还原型细菌型 DsrAB 的细菌(图 1)。DsrK 亚基含有 [4Fe-4S] 簇,通过催化 DsrC-三硫化物的还原在 DSR 中发挥关键作用。在缺乏 DsrK 的情况下,DsrM 可能无法支持完整的 DsrC 还原。然而,DsrM 仍可能作为膜结合的电子传递模块发挥功能,潜在地与替代的氧化还原伴侣相互作用。
我们的结果表明,在 DSR 起源时,编码 DsrAB 的宿主微生物可以是细菌或古菌。在 DSR LCA 节点之前,所有 DsrAB 分支均由细菌编码(图 1)。在该节点之后,一条分支包含了几乎全为细菌序列的基底 II 型 DsrAB(仅一个古菌拷贝除外)。另一条分支则包含两个纯古菌簇:RA-DsrAB 和过渡型古菌型 DsrAB。由于目前数据可用性的限制,难以确定 DsrAB 是否在 DSR LCA 节点处从细菌供体横向转移至细菌或古菌受体。
与高温至中温环境中的现存 DsrA 相比,DSR 起源时预测祖先 DsrA 蛋白的 Topt (73°C) 表明,微生物宿主可能生活在热泉喷口附近或其中(图 2-4)。然而,值得注意的是,具有高 Topt 的酶在生活于略低环境温度的微生物中仍可保持功能活性(图 2 和图 3)。这一观察可以很好地解释最早 DSR 地质记录形成期间估算的环境温度 (<60°C)。尽管这一发现在一定程度上证实了先前一项基因组研究的结论,但该研究中来自中温环境的未能解析分支(bootstrap <90)使其结论存在一定争议。此外,该研究中作为现存嗜热菌和超嗜热菌(即在 >80°C 的环境温度下生长的生物)编码的基底支系 DsrAB 的存在,并不一定意味着 DSR 起源于高温和超高温环境。Dsr 基因在细菌和古菌之间频繁转移。现存嗜热菌和超嗜热性古菌的拷贝可能是从曾经生活在中温和中热环境中的供体古菌或细菌转移而来的。因此,Dsr 的起源温度不能通过直接参考携带现存 dsrA/dsrB 微生物的栖息地温度来确定。在本研究中,我们对现存 DsrAB 蛋白进行祖先序列分析来确定 DSR 的起源。这种方法利用系统发育模型来独立于编码这些蛋白的宿主微生物推断祖先蛋白序列。因此,从这些祖先序列推断的 Topt 值反映了酶本身在温度适应方面的内在特征。
尽管 DSR 可能在 RA-DsrAB 的 LCA 之前便已出现,RA-DsrAB 仍是适应性最强、多样性最高的 DsrAB 类型之一,也是目前有 DSR 活性实验证据的最古老类型。到 RA-DsrAB 的 LCA(定年为 2.795 Ga)时,DsrABCNMK 最小级联集合已经建立,并在其五个亚支系中普遍保存(图 1)。在热环境中起源之后,一些携带 RA-DsrAB 的古菌逐渐适应了中温和中热环境,而另一些则留在热环境中或适应了超高温环境。在中太古代和新太古代 (3.2-2.5 Ga),地球大气层开始积累游离氧,这很可能是由产氧光合作用驱动的,直到大气层在 GOE 期间被永久氧化。在这一逐渐氧化的过程中,风化的硫化物被引入更大规模的多样化环境中。在各种物理化学条件下,硫氧化物的广泛供应为亚硫酸盐还原古菌创造了众多生态位,支持了 GOE 之后 RA-DsrAB(图 4)及其古菌宿主(图 2 和图 3)的适应性扩张。特别是在早新元古代超大陆罗迪尼亚 (1.3-0.9 Ga) 的形成过程中,增强的造山运动可能导致硫化矿床的暴露,这些矿床被氧化后产生硫酸,从而形成局部酸性环境。这些条件可能促进了类 AMD 环境的出现,进而有利于编码 RA-DsrAB 的嗜中温菌和嗜酸菌的繁盛。实际上,支系 1、3 和 5 中的 RA-DsrAB 在 1.340 至 1.205 Ga 之间被转移至中温酸性环境中的热原体门和亚硝化球菌纲(图 2-4)。
综上所述,我们重建了 DsrAB 和其他 Dsr 蛋白的系统发育树,并推断 DSR 途径的核心成分 DsrABCNM 在古太古代便已组装完成。物种树和蛋白质树的分子定年以及祖先序列重建共同表明,DSR 途径很可能起源于约 3.508 Ga,估算的祖先 DsrA Topt 为 73°C,支持了 DSR 热起源假说。此外,我们对 RA-DsrAB 亚支系的分析揭示了酶和物种如何随时间适应多样化的地质环境。这项研究扩展了我们对 DSR 早期演化组装的认识,但仍有若干问题有待解答。基底型基因组的稀缺性限制了对 Dsr 级联组装最早步骤的分析分辨率,使古菌还是细菌起源的问题悬而未决。未来深度分支基因组的获取,结合功能测定和更严格的地球化学约束,对于深化我们对微生物 DSR 起源和早期多样化的认识至关重要。
材料与方法
DsrA 和 DsrB 同源物搜索
收集了 3,031 个 AMD MAGs 和 65,703 个 GTDB 代表性基因组 (207_v2) 以搜索 DsrA 和 DsrB 同源物。AMD MAGs 来自我们两项前期研究的数据存储(NCBI BioProjects PRJNA666025 和 PRJNA666095)。90 个 AMD 沉积物样品于 2017 年 8 月至 10 月从华南六个省份的 18 个矿区采集,两个尾矿岩心于 2017 年 10 月从广东省韶关市凡口铅/锌硫化矿尾矿处采集(图 S12A)。详细的 DNA 提取程序和理化参数测定方法见两项前期研究。使用参数"-p meta -g 11 -f gff -q -m"通过 Prodigal v2.6.3 对 AMD MAGs 的编码蛋白进行预测。使用 GTDB-tk 207_v2 对这些 MAGs 进行分类学分类。GTDB 代表性基因组的编码蛋白和分类学分类从 GTDB 网站获取。使用从 KOfam 数据库(2024 年 7 月 4 日下载)和 TIGRfam 数据库(2024 年 7 月 10 日下载)中获取的 DsrA 和 DsrB 隐马尔可夫模型,通过 hmmscan v3.2.1(对 DsrA 设置"-T 223"选项,对 DsrB 设置"-T 205"选项)(DsrA 的 K11180 和 DsrB 的 K11181,DsrA 的 TIGR02064 和 DsrB 的 TIGR02066)搜索 DsrA 和 DsrB 同源物。仅保留在同一基因组内彼此相邻的 dsrA 和 dsrB 基因对,并将同一对的 dsrA 和 dsrB 基因序列串联用于下游分析(dsrAB 指串联的 dsrA 和 dsrB 基因)。使用 CD-HIT v4.6.8(参数设置为"-c 0.75 -n 5")去除冗余序列。通过验证两个保守基序——铁血红素结合 Cx5CXnCX3C 基序和 [Fe₄S₄] 簇结合 CX₂CX₂C 基序——的存在,对 DsrA 序列进行进一步验证,最终获得 415 条串联 DsrAB 序列。每个基因组中 DsrAB 的多个拷贝均被标记(表 S1)。其他 Dsr 蛋白的注释通过 Disco 和 SCycDB 进行。CbiA、CobB 和 CfbB 序列根据先前研究选取,用于分析 DsrN 的系统发育。
Dsr 蛋白的系统发育树
使用 MAFFT v7.505(默认参数)构建 DsrAB、DsrC、DsrN、DsrM、DsrK、DsrJ、DsrO、DsrP、DsrD、DsrT 和 DsrEFH 蛋白的多序列比对。使用 TrimAl v1.4.rev15("-gt 0.95 -cons 50")去除空位。使用 IQTree v.2.2.0.3("-m MFP -B 1000 –bnni")重建最大似然树,并在 iTOL v7 中可视化。随后使用 Treemmer v0.3(-RTL 0.3)将还原型细菌型 DsrAB 和氧化型细菌型 DsrAB 树中的分支数量减少至 31 条。按照先前研究的建议进行旁系同源物定根,以确定 DsrAB 串联树的根。具体操作包括:汇集未串联的 DsrA 和 DsrB 成对序列,随后使用与串联 DsrAB 树相同的方法构建系统发育树,再用来自串联 DsrAB 树的等量 DsrA 和 DsrB 亚基进行旁系同源物定根。由三条绿弯菌门和八条厚壁菌门序列(来自基底 I 型 DsrAB 的序列)组成的单系支系,在 DsrA 和 DsrB 两条分支中均显示为最基底的类群,与先前研究一致(图 S13)。因此,我们使用这 11 个分类单元作为外群来确定 DsrAB 串联树的根。DsrC 树以基底型和古菌型簇作为 DsrAB 树对应物的参照进行定根(图 S2)。CbiA、CobB 和 CfbB 序列作为外群用于 DsrN 树的定根(图 S3)。DsrE、DsrF 和 DsrH 树也采用旁系同源物定根法进行定根(图 S11)。其他系统发育树在中点处定根。
祖先序列生成与特征预测
利用 PAML v4.9 软件包中的 codeml 程序,根据序列比对和树的拓扑结构,从计算上推断 DsrA 系统发育树内部节点的氨基酸序列。采用贝叶斯统计框架(结合伽马分布)推断每个位点的后验氨基酸概率。分析过程中不设分子钟。使用通用密码子(icode = 0)和固定枝长选项(Mgene = 0)。使用 DeepET 预测祖先和现存 DsrAB 序列的 Topt。
物种树的系统发育推断
重建了编码 RA-dsrAB 的代表性古菌和细菌支系的系统发育物种树。具体而言,使用 CheckM v1.1.3 评估了 12 个非冗余的编码 RA-dsrAB 的 AMD MAGs(CD-HIT "-c 0.75 -n 5")的质量。完整度 >75% 且污染率 <5% 的 MAGs 被纳入分析(表 S6)。对于 GTDB 基因组 (r220),选取完整度 >75% 且污染率 <5% 的基因组用于下游分析。以"完整度 - 4 × 污染率"计算的质量值最高的两个 GTDB 基因组被选作每个古菌门的代表(热原体门和热变形菌门除外,各门每个纲选取两个代表基因组)。进一步选取热原体门和热变形菌门中携带 dsrAB 的家族级 GTDB 基因组。随机选取并下载 GTDB 网站上的四个细菌基因组作为外群物种。最终选取 306 个高质量基因组用于下游分析。使用 OMA v2.6.0 识别直系同源基因,保留在 306 个高质量基因组中 261 个 (85%) 中存在的 47 个候选标记基因。使用 NCBI BLAST 网站对标记基因进行注释,每个标记基因的最佳命中结果见表 S7。使用 MAFFT(默认参数)构建这些候选单基因树的多序列比对,随后使用 TrimAl("-gappyout")去除比对空位。通过先前研究提供的脚本 tre_make_split.pl 和 tre_discordance_two.pl 确认单基因树拓扑一致性后,纳入所有候选标记基因。使用 catfasta2phyml.pl 串联各标记基因的多序列比对。使用 alignment_pruner.pl 脚本(来自先前研究)去除串联标记基因的组成异质性位点(0%、5%、10%、15%、20%、25%、30%、35% 和 40%)。随后使用 IQTree(参数为"-m LG + PMSF + F + G -B 1000 –bnni")推断物种树。
古菌物种树和 DsrA 树的分子定年
使用 MEGA v11.0.13 中的 RelTime-ML 和 LG + G 模型估算古菌物种树的节点分歧时间。选取古菌的根 (4.38-3.46 Ga) 和三个与 GOE 相关的节点(即热变形菌目、热变形菌科和热纤菌科(g__JAADER01 除外)的根,<2.32 Ga)作为校准约束(表 S4)。为确定后三个约束,使用 hmmsearch v3.2.1(选项"domE 1-e5")在好氧古菌中搜索细胞色素氧化酶(K02274 和 K02275)和细胞色素 bd 醌氧化酶(K00425 和 K00426),以识别具有厌氧祖先的支系(图 S14 和表 S8)。这些类群将在 2.32 Ga 大气氧浓度升高后从厌氧生活方式演化为好氧生活方式。
对于 DsrA 树的分子定年,使用 hmmscan v3.2.1 在 306 个基因组中搜索 DsrA 和 DsrB,使用 KOfam(DsrA 的 K11180 和 DsrB 的 K11181)和 TIGRfam(DsrA 的 TIGR02064 和 DsrB 的 TIGR02066)数据库中的隐马尔可夫模型,对 DsrA 使用选项"-T 223",对 DsrB 使用选项"-T 205"。保留同一基因组中相邻的 DsrA 和 DsrB 序列,获取等量代表性 DsrA 和 DsrB 序列,使用 MAFFT(默认参数)进行多序列比对。使用 TrimAl("-gt 0.95 -cons 50")去除比对空位,使用 IQTree("-m MFP -B 1000 –bnni")重建最大似然树。以 DsrB 支系作为外群进行定根。物种树定年结果用作 DsrA 树定年的约束(表 S4)。DsrAB 串联树按照与 DsrA 树相同的步骤重建,但多序列比对中采用串联的 DsrA 和 DsrB 序列。
使用 ALE v1.0 进行 DsrAB 基因树与物种树的调和,过滤掉转移频率小于 0.3 的输出(表 S9)。通过筛选检测到 DsrAB 转移事件的分支,将物种树上该分支的时间范围设定为 DsrA 树上对应支系 LCA 节点的约束。仅含三条或更多分支的支系被用作约束。树文件使用 iTOL 和 tvBOT v2.6.1 可视化。
AMD 宏基因组中 dsrAB 支系的基因丰度计算
使用 Diamond blastp(参数"--more-sensitive --max-target-seqs. 60")对 DsrAB 树中的 DsrA 蛋白进行成对序列比对。随后绘制成对序列相似度热图,以评估五个 DsrA 支系之间的相似度阈值(图 S1)。选择 60% 的相似度阈值来区分不同支系的 DsrA 蛋白。
AMD 沉积物原始读段的质量控制按先前描述进行,高质量读段使用 SPAdes v3.14.1 组装成重叠群。使用 CoverM 和 minimap2-sr 计算 AMD 样品中重叠群的丰度。覆盖度方法为修剪均值法,即去除覆盖最深和最浅的位置后计算每个位置对齐读段的平均数量。使用 Diamond blastp(参数"-k 5 -e 1e-5 --id 60")在重叠群的编码蛋白中搜索 DsrAB 树中的 DsrA 蛋白。所得 DsrA 蛋白的丰度定义为编码它们的基因组重叠群的丰度。
统计分析
所有统计分析在 R 环境 (v.4.3.2) 中使用 R 包进行。具体而言,使用 corrplot 包(v 0.92)中的"corrplot"函数进行斯皮尔曼相关分析,以评估 90 个 AMD 沉积物样品中携带 dsrAB 的古菌种群丰度与理化因素之间的关系。使用 vegan 包(v 2.6-4)进行冗余分析 (RDA),以展示携带 dsrAB 的古菌群落结构对理化因素的响应。在进行 RDA 之前,使用"decostand"函数通过 Hellinger 方法对微生物丰度矩阵进行标准化,并通过取对数对环境因素矩阵进行标准化。使用"envfit"函数(将环境因素拟合到物种分布)筛选 RDA 中的环境因素,保留 p < 0.001 的环境因素。使用"permutest"函数的蒙特卡洛置换检验评估 RDA 结果 (p < 0.001)。使用非参数多元方差分析 (Adonis) 检验含 >10 个样品的不同矿物类型(即铜矿、铅/锌矿和多金属矿)中携带 dsrAB 的古菌丰度。使用 vegan 包对多金属样品进行分析。使用 ggpmisc (v 0.6.0) 中的"dist.node"函数计算内部节点或分支与 RA-DsrAB LCA 之间的距离。对五个支系中的每一个,在祖先蛋白内部节点或每条分支现存蛋白预测的 Topt 值与各内部节点或分支到最新共同祖先的演化距离之间进行线性回归。使用 lm 函数计算线性回归曲线方程,并提取 R² 和 p 值。使用 ggplot2 包 (v3.3.4) 和 gglayer 包 (v0.0.4) 进行数据可视化。使用方差分析 (ANOVA) 分析五个 RA-DsrAB 支系的丰度在不同矿物类型或采样点之间的差异。
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。
官方微信
《腐蚀与防护网电子期刊》征订启事
- 投稿联系:编辑部
- 电话:010-62316606
- 邮箱:fsfhzy666@163.com
- 腐蚀与防护网官方QQ群:140808415
“海洋金属”——钛合金在舰船的
腐蚀与“海上丝绸之路”